





近日,上海交通大学机械与动力工程学院朱向阳、盛鑫军、于洋团队,联合英国帝国理工学院生物工程系达里奥·法里纳(Dario Farina)团队和西门子医疗,在 Nature Communications 上发表论文(目前为“在线优先”版本)。
他们把动态超声和磁共振成像结合起来,在活人的前臂里三维重建出了负责弯曲食指、中指、无名指和小指的四个“肌肉分区”,并画出了每个分区内肌纤维的走向。在 10 名健康受试者中,重建出的分区位置与经典的尸体解剖描述一致,并且能“预测”皮肤表面肌电信号最强的位置:40 个测试样本中,有 38 个落在了对应分区的投影范围内。
简言之就是:让每根手指单独动一动,用超声看清“谁在动”,再把这些二维切面拼进磁共振的三维地图里。那么,为什么这些分区这么难找?找到它们又有什么用?
没有隔墙的四个房间
先认识一下主角:指浅屈肌(flexor digitorum superficialis,下文简称 FDS)。
它位于前臂掌侧,是弯曲手指的主要肌肉之一。和一般“一块肌肉管一个动作”的印象不同,FDS 从前臂一路延伸,最终分出四条肌腱,分别连到食指、中指、无名指和小指。肌腹内部也相应地分成四个“功能分区”,每个分区主要负责一根手指。
问题在于,这四个分区之间并没有清晰的“隔墙”。论文指出,分区之间的筋膜可能薄到不足 1 毫米,甚至根本不存在。打个比方,这就像一套没有隔墙的合租房,四户人家各住一角,但从外面看只是一个大开间。
正因为如此,传统的静态磁共振图像几乎无法把它们区分开。论文梳理,此前的磁共振弹性成像等方法只能在单个横截面上推断分区,而且缺乏验证;表面肌电和超声能捕捉手指运动时的肌肉活动,却缺少完整的三维解剖信息,也得不到肌纤维的走向。换句话说,在这项研究之前,分区分割基本停留在二维层面,且缺乏验证。
那为什么要费这么大劲去找它们?
论文认为,分区可能正是神经系统控制手指的“基本单元”。越来越多的运动单位记录和计算研究提示,中枢神经系统并不是把一块肌肉当作整体来指挥,而是把共同的指令分配给一簇簇运动神经元,它们可能只对应一块肌肉的某一部分。分区恰好是这种控制模块在解剖上的天然候选。
此外,它还关系到三类实际应用。
第一是肌肉骨骼模型。论文指出,现有手部模型的分区参数往往是按比例缩放“估”出来的,而非实测,这可能让力量预测出现较大误差;而模型输出的肌肉力,对纤维长度和生理横截面积这两个参数最为敏感。
第二是肌电仿真和“数字孪生”。肌电信号是无数肌纤维动作电位的叠加,纤维的走向决定了信号的形状。但目前的仿真通常把纤维简化成长度固定的曲线。论文提到,缺乏真实的纤维轨迹,已被视为限制肌电仿真逼真度的关键瓶颈。
第三是人机接口。近年来,从前臂表面肌电解码手指动作的腕带式设备发展很快,论文就援引了 Meta 公司团队 2025 年发表在 Nature 上的通用神经运动接口研究。但由于控制手指的肌肉挤在一起,不同手指动作时皮肤上的肌电“热区”大量重叠,而这种重叠此前从未和底层解剖结构定量联系起来。
让肌肉“动起来”再拍照
既然分区之间没有可见的边界,那就换个思路:不看“墙”,看“谁在动”。
研究的核心假设是:当一根手指单独弯曲、其他手指被固定时,负责这根手指的分区,其组织运动方向会与周围区域不同。论文特别强调,这里用的是运动的“方向”而非“幅度”,因为肌肉收缩时,主动收缩的部分和被牵拉的部分位移幅度可能相近,但方向不同。
回到合租房的比方:从外面看不出隔墙,那就挨个喊名字,看谁站起来。
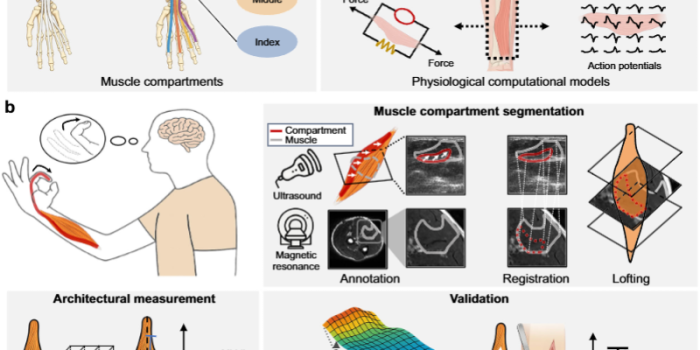
具体来说,受试者把前臂放在一个定制平台上,戴上数据手套,非目标手指被约束住。在节拍器引导下,目标手指以每秒 1 次的频率连续屈伸 10 秒。与此同时,一台可编程超声研究系统以每秒 500 帧的速度,在前臂横截面上拍摄肌肉的运动。探头沿前臂长轴每隔 3 厘米移动一次,逐段采集。
接下来的流程分为三步:标注、配准和放样。
第一步“标注”。团队用光流算法计算超声图像中每一处组织的运动方向,得到一张“方向场”。然后在预设的解剖区域内撒下“种子点”,让区域沿着方向一致的组织“生长”,最终圈出目标分区。论文显示,即便换不同的种子位置,同一分区的生长结果重合度也超过 0.95,说明结果对初始设置并不敏感。
第二步“配准”。超声给出的是一张张二维切面,而且探头按压会让肌肉轻微变形,前臂姿势也和磁共振扫描时不完全一样。要把这些切面放进统一的三维空间,就需要“对齐”。
团队在超声和磁共振图像中分别勾出 FDS 的外轮廓,在轮廓内均匀撒点,再用二分图匹配找到两组点之间“总位移最小”的对应关系,相当于假设肌肉以最小的形变从一种状态变到另一种状态。这样,超声里的分区轮廓就能被“搬”到磁共振坐标系中。
这有点像把一张张街景照片准确地钉到卫星地图上:照片记录了细节,地图提供了全局坐标。
第三步“放样”。把不同截面上的分区轮廓用三次样条曲线平滑连接起来,就像造船时用一道道肋骨撑起船身,最终得到四个连续的三维分区体积。
有了分区的三维“外壳”,下一步是看清里面的纤维。
团队用的是弥散张量成像(DTI)。它的原理是:水分子在肌纤维中更容易沿着纤维方向扩散,就像水更容易顺着木头的纹理渗透。测出每个位置水分子扩散的主方向,就能把纤维的走向一段段“追踪”出来。
关键的改进在于,追踪被严格限制在各自的分区之内:纤维一旦碰到分区边界就停止延伸。如果不加限制,追踪出的纤维会“串门”,跨越分区边界,导致测得的纤维偏长。团队还用此前开发的“最远流线采样”方法,先在每个分区内生成 10,000 条候选纤维,再从中挑出 3,000 条分布尽量均匀的纤维,避免纤维扎堆在信号好的区域。
整套磁共振扫描并不算长:用于解剖参考的 T2 加权序列约 3 分半钟,弥散张量序列不到 5 分钟。
没有“标准答案”,怎么验证
做到这里,一个绕不开的问题是:怎么知道重建出来的分区是对的?
论文坦言,活体肌肉分区并不存在“金标准”,毕竟不可能把活人的前臂打开来对照。为此,团队搭建了一条“两级证据链”:一是看重建结果是否符合解剖学常识,二是看它能否与另一种独立测量的功能信号对上。
先看解剖。团队把重建结果与此前发表的尸体解剖研究进行了对比。
结果显示,重建出的分区重现了 FDS 经典的“双层结构”:控制中指和无名指的分区主要位于浅层,中指偏桡侧(拇指一侧),无名指偏尺侧(小指一侧);控制食指和小指的分区主要位于深层,同样呈现桡-尺侧分离的趋势。
纤维层面也是如此。在食指、中指和无名指分区中,近端纤维大致与前臂长轴平行,向远端逐渐倾斜;而小指分区的纤维整体更斜,近端纤维更短。这一模式在全部 10 名受试者中都保持一致,也与尸体解剖的描述相符。
定量指标同样吻合。各分区纤维长度的排序,活体与解剖数据完全一致:中指 > 无名指 > 食指 > 小指。各分区的羽状角(纤维与肌肉受力方向的夹角)则差异很小,平均差值不到 2°。
再看功能。团队把每位受试者的三维分区“投影”到前臂皮肤表面,得到分区在皮肤上的边界,然后与高密度表面肌电记录到的激活中心进行比对。肌电测试时,受试者用目标手指以最大力量的 25% 持续按压 12 秒。
结果显示,在 10 名受试者、4 种手指任务共 40 个样本中,有 38 个激活中心落在了对应分区的投影边界之内,一致率为 95%。其中中指和无名指任务全部吻合;食指和小指任务各有 1 例偏离。
论文分析,这两例偏离并没有呈现系统性的方向偏差,回溯磁共振图像后发现,它们更可能来自掌长肌、尺侧腕屈肌等邻近腕屈肌的协同收缩,以及组织导电带来的信号“扩散”,而非分割错误。
食指管力气,无名指管“包住”
有了可靠的分区,团队得以回答一个更有意思的问题:四根手指的“专属肌肉”有什么不同?
首先,分区约束本身就很重要。对比显示,如果不加分区限制、直接在整块肌肉里追踪,纤维会跨越分区边界,导致纤维长度被高估、生理横截面积被低估。论文指出,加入分区约束后,这两个参数的变化幅度约为 29%,而分区约束得到的数值与尸体解剖参考更接近。
不过论文也坦率承认:如果只关心整块 FDS 的结构,20% 到 30% 的平均差异可以粗略校正,未必值得花这么大成本做分割;但若要建立分区级别的模型,分割是不可或缺的前提。
接下来是四个分区的比较。团队用两个参数搭建了一张“功能地图”:横轴是纤维长度,代表肌肉能拉动的距离,即“位移能力”;纵轴是生理横截面积,大致反映并联的纤维数量,代表“力量能力”。两者的乘积可以近似看作做功能力。
在这张地图上,四个分区大致排成一个矩形,各占一角。
食指分区位于“力量大、位移小”的一角,论文认为它在抓握中更多承担“出力”的角色;中指分区力量和位移能力都高,做功潜力最大,在抓握中既出力又负责“包住”物体;无名指分区力量较小但位移能力强,更像是负责把物体“包裹”起来;小指分区则力量和位移都最小,独立输出能力有限,更依赖与其他手指的协同。
总体来看,食指和中指构成“高力量组”,为抓握提供主要动力;无名指和小指构成“低力量组”,主要负责包裹和稳定。论文称,这与临床上的观察一致。
这或许也为“小指一弯、无名指跟着动”的日常体验提供了一个结构层面的注脚,不过论文并未直接研究这一现象。
团队还测试了一个常见假设:生理横截面积能否预测每根手指的最大力量?结果是“部分可以”。在手指之间,它能区分出两个力量组;但在同一根手指的不同受试者之间,二者的线性关系并不显著,把所有手指合在一起时,决定系数 R² 也只有 0.2354。论文解释,最大力量还取决于羽状角、肌腱松弛长度以及神经系统的募集能力等因素。
最后,论文还做了一项初步分析:把分区解剖信息纳入肌电通道的选择,用于估计单指屈曲力量。结果显示,由于分区在皮肤上的投影大量重叠,按手指“挑选”电极通道的收益有限。论文认为,这为“为什么从前臂表面很难分离出单根手指的肌电信号”这一长期难题,提供了结构层面的解释。
结语
值得注意的是,这项研究仍有不少局限,论文也逐一做了说明。
首先,样本量较小,且代表性有限。研究只纳入了 10 名右利手的健康亚洲受试者,其中男性 8 人、女性 2 人,平均年龄 25 岁。论文特别提到,小指分区的结构在不同人群中可能存在差异:在亚洲人群中,小指分区的肌腱往往贯穿整个分区,而在其他人群中,这条肌腱可能在中段分叉甚至缺失。这项研究无法评估这种差异。
其次,活体分区没有“金标准”。与尸体解剖的比较本身就受死后形态变化等因素影响,论文因此强调,解剖对照与肌电一致性只能视为相互印证的证据,而非对活体分区边界的绝对定义。
这里还有一点值得留意(编辑注):肌电验证的标准是“激活中心落在分区投影边界之内”,而论文也承认,各分区在皮肤上的投影大量重叠。投影范围越大、越重叠,“落在其中”就越容易满足,因此 95% 的一致率更适合理解为“方向正确”,而非精确定位。
第三,结果与姿势和任务有关。重建出的分区是在特定前臂姿势、单指运动且其他手指被固定的条件下得到的。论文指出,换一种姿势、力量水平或协同收缩模式,观察到的功能边界都可能移动。此外,磁共振、超声和肌电是分开采集的,并非同步测量。
第四,方法本身存在误差来源。超声与磁共振的配准依赖截面轮廓的对应,而非肌肉内部的独立标记点,探头压迫、超声切面外的运动都可能留下残余误差;弥散张量成像只用了 12 个梯度方向,角分辨率有限,可能影响纤维长度和羽状角的估计。而且目前只在健康肌肉上验证过,脂肪浸润、纤维化或瘢痕组织都可能干扰纤维追踪,用于患者前还需要进一步验证。
此外,FDS 位置表浅、便于超声和表面肌电观测,论文称它是验证这套方法的“理想肌肉”。能否推广到更深、更大的肌肉,例如下肢或躯干肌肉,仍有待评估。
如今,研究者终于能在活人的前臂里,看清那四个没有隔墙的房间,以及每个房间里纤维的走向。距离真正读懂手指的“独立”,路还很长。但至少,从肌肉到神经,人们手里多了一张三维地图。
参考资料
Li, Y., Yu, Y., Kang, Y. et al. In vivo ultrasound–MRI 3D mapping of neuromuscular compartments reveals the neuromechanical architecture of finger-specific control. Nat Commun (2026). https://doi.org/10.1038/s41467-026-79116-1
